|
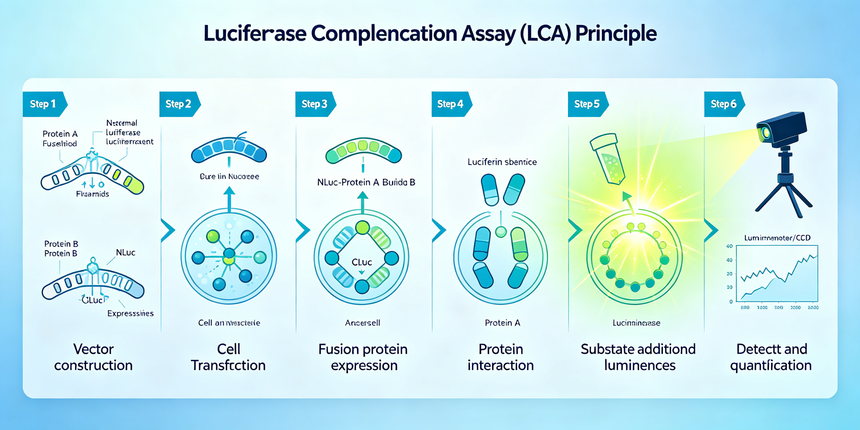
荧光素酶蛋白互补实验(LCA)荧光素酶蛋白互补实验(Luciferase Complementation Assay,LCA),又称分裂荧光素酶互补实验(Split Luciferase Complementation Assay),是蛋白质片段互补技术(Protein Fragment Complementation Assay,PFCA)的重要分支,由Luker等人于2004年首次建立,用于在活细胞内实时检测蛋白质-蛋白质相互作用。其核心原理是将萤火虫荧光素酶(Firefly Luciferase,Fluc,约550个氨基酸)在特定位点(通常为第416位氨基酸处)拆分为N端片段(NLuc,aa 1-416)和C端片段(CLuc,aa 398-550,两个片段之间有少量重叠以提高互补效率),这两个片段单独存在时均无催化活性。将NLuc与目标蛋白A融合、CLuc与目标蛋白B融合(或反之),共转染至活细胞中表达。如果蛋白A与蛋白B发生相互作用,则NLuc和CLuc被牵引至空间邻近位置,发生分子内互补并重新折叠为具有完整三维结构和催化活性的荧光素酶全酶;此时加入底物荧光素(D-Luciferin),在ATP、Mg²⁺和O₂存在的条件下,重组的荧光素酶催化荧光素氧化脱羧,产生波长约560nm的生物发光信号,发光强度与蛋白互作强度正相关,可通过化学发光检测仪(Luminometer)或CCD活体成像系统进行定性和定量检测。 根据所使用的荧光素酶类型不同,LCA主要分为以下几种体系:①萤火虫荧光素酶(Firefly Luciferase,Fluc)互补体系:**经典、应用**广泛的LCA体系,Fluc拆分位点成熟,信号稳定,底物为D-Luciferin,发光波长约560nm,适合细胞水平和活体动物水平的蛋白互作检测;②海肾荧光素酶(Renilla Luciferase,Rluc)互补体系:Rluc体积较小(311aa),底物为腔肠素(Coelenterazine),发光波长约480nm,可与Fluc体系同时使用进行双荧光素酶互补检测;③NanoLuc/NanoBiT体系:基于深海虾来源的NanoLuc荧光素酶(19kDa,仅171aa)开发的新一代分裂荧光素酶系统,Promega公司商品化为NanoBiT,包含大片段LgBiT(18kDa)和小片段SmBiT(11个氨基酸),具有发光强度高(比Fluc亮约100倍)、背景极低、片段小对目标蛋白干扰小、适合检测弱相互作用和瞬时互作等优势,是目前**灵敏的LCA体系。LCA技术的核心优势在于能够在活细胞生理环境中实时、定量地检测蛋白质相互作用,且可用于动态监测互作变化和高通量药物筛选。与Co-IP(体外)、酵母双杂交(异源体系)等技术相比,LCA在活细胞内进行,蛋白的翻译后修饰、亚细胞定位和构象更接近天然状态,且发光信号无内源性背景(哺乳动物细胞无自发光),信噪比极高。LCA实验必须进行严格的对照设置以排除假阳性:空载体对照(NLuc空载体+CLuc空载体)排除载体本身的背景发光;单融合对照(NLuc-蛋白A+CLuc空载体、NLuc空载体+CLuc-蛋白B)排除单个融合蛋白的自激活或非特异性互补;阳性对照(已知的强互作对,如bZIP转录因子二聚化、FKBP12-FRB雷帕霉素诱导互作)验证实验体系正常工作;阴性对照(蛋白A的互作缺陷突变体+蛋白B)验证信号的特异性。此外,需通过Western Blot验证两个融合蛋白的表达水平,排除因表达量差异导致的信号差异。LCA检测到的蛋白互作通常需要进一步通过Co-IP、GST pull-down、FRET、BiFC等技术进行独立验证。 图:荧光素酶蛋白互补实验(Luciferase Complementation Assay,LCA)实验原理与操作流程 服务优势💡 活细胞内实时检测在活细胞生理环境中检测蛋白互作,蛋白的翻译后修饰、亚细胞定位和构象更接近天然状态,可实时动态监测互作变化,无需裂解细胞。 🔬 高灵敏度低背景生物发光检测无内源性自发荧光背景,信噪比极高;NanoBiT体系发光强度比传统Fluc高约100倍,可检测弱相互作用和瞬时互作。 📊 定性定量兼具既可通过CCD成像系统进行定性观察(如植物叶片活体成像),也可通过化学发光检测仪进行精确定量,发光强度与互作强度正相关。 📦 交付内容完整提供融合表达载体构建测序结果、细胞转染验证图、发光检测原始数据、相对发光强度(RLU)分析、统计学分析及详细实验报告,可直接用于论文发表。 服务流程1 接收订单及序列 确认实验方案 接收基因序列/细胞株 2 融合表达载体构建 NLuc/CLuc融合载体构建 测序验证正确 3 细胞转染与表达 共转染目标细胞 WB验证融合蛋白表达 4 底物加入与发光检测 加入荧光素底物 化学发光仪/CCD检测 5 数据采集与分析 RLU数据归一化处理 统计学分析互作强度 6 报告交付 原始数据+分析图表 详细实验报告交付 客户提供样品与材料要求
服务说明
案例展示荧光素酶互补实验验证转录因子Nrf2与Keap1的蛋白互作及其在抗氧化通路中的动态调控机制 研究利用萤火虫荧光素酶互补实验(LCA)在活细胞内实时验证了转录因子Nrf2与Keap1(Kelch样ECH关联蛋白1)之间的蛋白质相互作用,并揭示了抗氧化剂处理对该互作的动态调控。Nrf2是细胞抗氧化应答的核心转录因子,在正常状态下被Keap1锚定在胞质中并介导其泛素化降解;当细胞受到氧化应激时,Keap1的半胱氨酸残基被修饰,导致Nrf2-Keap1复合物解离,Nrf2转位入核激活抗氧化基因表达。研究者将Nrf2的Neh2结构域(与Keap1结合的区域)与NLuc融合,将Keap1的Kelch结构域与CLuc融合,共转染HEK293T细胞。化学发光检测显示,Nrf2-NLuc与Keap1-CLuc共转染组的相对发光强度(RLU)是空载体对照组的约28倍,单融合对照(Nrf2-NLuc+CLuc空载体、NLuc空载体+Keap1-CLuc)仅为背景水平,证明Nrf2与Keap1在活细胞内存在强相互作用。Western Blot验证了两个融合蛋白的表达水平一致,排除了表达量差异的影响。进一步使用抗氧化剂叔丁基对苯二酚(tBHQ)和萝卜硫素(Sulforaphane)处理细胞,LCA实时监测显示Nrf2-Keap1互作信号在药物处理后15分钟内开始下降,1小时达到**低值(约下降65%),随后逐渐恢复,呈现典型的动态解离-再结合曲线。剂量-效应实验显示tBHQ的IC50约为3.2μM,与文献报道的Keap1修饰亲和力一致。突变体对照实验显示,Keap1的C151S突变(关键氧化感受位点)完全丧失了对tBHQ的响应,Nrf2-Keap1互作信号不受药物影响,证明C151是抗氧化剂诱导互作解离的关键位点。该研究同时通过Co-IP和GST pull-down验证了LCA结果的可靠性。该研究展示了LCA在活细胞内实时定量检测蛋白互作动态变化的强大能力,为信号通路研究和药物靶点验证提供了重要技术手段。 NanoBiT荧光素酶互补系统检测G蛋白偶联受体β2AR与β-arrestin2的互作及高通量药物筛选 研究利用新一代NanoBiT荧光素酶互补系统在活细胞内检测了G蛋白偶联受体(GPCR)β2肾上腺素能受体(β2AR)与β-arrestin2之间的配体依赖性相互作用,并建立了基于该互作的高通量药物筛选平台。NanoBiT系统基于NanoLuc荧光素酶拆分而来,包含大片段LgBiT(17.6kDa)和小片段SmBiT(仅11个氨基酸),两者之间的固有亲和力极低(Kd约190μM),只有当融合蛋白发生互作时才被牵引至邻近位置发生互补,背景极低且发光强度高。研究者将β2AR的C端与LgBiT融合,将β-arrestin2与SmBiT融合,共转染HEK293细胞。在无配体状态下,β2AR与β-arrestin2的互作信号极低(接近背景);加入β2AR激动剂异丙肾上腺素(Isoproterenol)后,发光信号在5分钟内迅速升高约35倍,30分钟达到峰值,呈现典型的配体诱导的GPCR-arrestin募集动力学。剂量-效应实验显示异丙肾上腺素的EC50约为12nM,与文献报道的β2AR-arrestin信号通路亲和力一致。使用NanoBiT系统进行高通量筛选验证,在384孔板中测试了已知的β2AR配体库(包括激动剂、拮抗剂、反向激动剂和偏向性配体共48种化合物),结果显示筛选体系的Z'因子为0.78(远高于0.5的高通量筛选标准),信号窗口(S/B)约为25倍,CV值<5%,证明该体系适合高通量药物筛选。筛选结果准确区分了不同类型的配体:激动剂和偏向性激动剂诱导β-arrestin2募集,拮抗剂和反向激动剂不诱导募集,且偏向性配体的arrestin募集效率与其已知的偏向性特征一致。进一步通过NanoBiT实时动力学分析发现,不同激动剂诱导的β2AR-β-arrestin2互作动力学存在显著差异,长效激动剂维持互作信号的时间显著长于短效激动剂,与受体内吞和脱敏动力学相关。该研究展示了NanoBiT系统在GPCR信号研究和高通量药物筛选中的高灵敏度和可靠性,为药物发现提供了新的技术平台。该LCA结果与BRET(生物发光共振能量转移)、Co-IP和受体内吞实验结果一致,验证了NanoBiT互补系统的可靠性。 Q&A 常见问题LCA与Co-IP、酵母双杂交(Y2H)、BiFC有什么区别?应该如何选择? 这四种技术都是研究蛋白质-蛋白质相互作用的常用方法,但原理和适用场景各有不同:①Co-IP(免疫共沉淀):体外实验,用目标蛋白的抗体从细胞裂解液中沉淀蛋白及其互作伙伴,通过WB或质谱检测,能捕获生理状态下的蛋白复合物(包括间接互作),但需要特异性抗体,且无法实时动态检测;②酵母双杂交(Y2H):在酵母细胞内进行,基于转录因子重建,适合高通量筛选未知互作蛋白(cDNA文库筛选),但酵母是异源体系,缺乏哺乳动物的翻译后修饰和亚细胞环境,假阳性率较高;③BiFC(双分子荧光互补):将荧光蛋白(如GFP/YFP)拆分为两个片段,分别融合目标蛋白,互作后荧光蛋白重建发出荧光,可在活细胞内观察互作的亚细胞定位,但荧光蛋白重建是不可逆的,无法检测瞬时或动态互作,且需要激发光可能产生光毒性和自发荧光背景;④LCA(荧光素酶互补):将荧光素酶拆分为两个片段,互作后重组产生生物发光,在活细胞内实时定量检测,无自发荧光背景,信噪比高,可检测动态互作和进行高通量筛选,但不能直接观察亚细胞定位(需配合荧光蛋白标记)。选择原则:筛选未知互作蛋白→Y2H(文库筛选);验证生理状态下的蛋白复合物→Co-IP;观察互作的亚细胞定位→BiFC;活细胞内实时定量检测互作动态、药物筛选→LCA。论文发表通常建议至少两种技术互为验证。 LCA有哪些类型?Fluc体系和NanoBiT体系如何选择? LCA根据荧光素酶类型主要分为三种体系:①萤火虫荧光素酶(Firefly Luciferase,Fluc)互补体系:**经典的LCA体系,Fluc约550aa,拆分位点成熟(通常在aa 416处),信号稳定,底物为D-Luciferin,发光波长约560nm,穿透力较强适合活体动物成像,成本较低,是目前应用**广泛的体系;②海肾荧光素酶(Renilla Luciferase,Rluc)互补体系:Rluc约311aa,体积较小,底物为腔肠素(Coelenterazine),发光波长约480nm,可与Fluc体系同时使用进行双荧光素酶互补检测,但腔肠素成本高且易自氧化;③NanoLuc/NanoBiT体系:基于深海虾来源的NanoLuc荧光素酶(19kDa,171aa)开发,Promega商品化为NanoBiT,包含LgBiT(18kDa)和SmBiT(11aa),发光强度比Fluc高约100倍,背景极低,片段小对目标蛋白的空间位阻和功能干扰小,特别适合检测弱相互作用和瞬时互作,是目前**灵敏的LCA体系,但试剂成本较高。选择原则:常规蛋白互作验证、预算有限→Fluc体系;检测弱互作/瞬时互作、需要高灵敏度、高通量药物筛选→NanoBiT体系;需要同时检测两对蛋白互作或内参归一化→Fluc+Rluc双荧光素酶互补体系。南京高斯生物提供Fluc和NanoBiT两种主流体系,可根据客户研究需求推荐合适的技术路线。 LCA实验如何设置对照排除假阳性?假阳性的原因有哪些? LCA的假阳性主要来自:①NLuc和CLuc片段本身的非特异性自互补(虽然拆分后固有亲和力低,但高表达时仍可能发生随机互补);②融合蛋白的过表达导致非特异性聚集;③目标蛋白的自激活或与荧光素酶片段的非特异性结合;④细胞毒性或底物处理导致的非特异性信号变化。排除假阳性的关键策略包括:①空载体对照(NLuc空载体+CLuc空载体):确定体系的基础背景发光值;②单融合对照(NLuc-蛋白A+CLuc空载体、NLuc空载体+CLuc-蛋白B):排除单个融合蛋白的自激活或与荧光素酶片段的非特异性结合,只有双融合组信号显著高于两个单融合对照才为真阳性;③阳性对照(已知强互作对,如bZIP转录因子二聚化、FKBP12-FRB雷帕霉素诱导互作):验证实验体系和检测系统正常工作;④阴性对照(蛋白A的互作缺陷突变体+蛋白B):如果突变体丧失互作信号,则证明信号是特异性的;⑤表达量验证:通过Western Blot验证各融合蛋白的表达水平,排除因表达量差异导致的信号差异(信号高可能只是因为蛋白表达多);⑥归一化处理:通常将双融合组的RLU值除以单融合对照的RLU值,以相对发光倍数表示互作强度,一般要求≥2-3倍才认为有显著互作;⑦独立技术验证:LCA阳性结果需通过Co-IP、GST pull-down、FRET/BiFC等独立技术验证。 LCA可以检测弱相互作用或瞬时蛋白互作吗?融合方向如何选择? LCA对弱相互作用和瞬时互作的检测能力取决于所使用的体系:①传统Fluc互补体系:NLuc和CLuc之间存在一定的固有亲和力,互补后形成的荧光素酶较稳定,一旦互补可能持续发光,因此更适合检测中等到强度的蛋白互作,对极弱或瞬时互作的检测能力有限;②NanoBiT体系:LgBiT和SmBiT之间的固有亲和力极低(Kd约190μM),互补是可逆的,发光信号与蛋白互作强度实时对应,互作解离后发光信号迅速下降,因此特别适合检测弱相互作用和瞬时/动态互作,是检测GPCR-arrestin募集、酶-底物瞬时结合等的**体系。关于融合方向(N端融合还是C端融合):荧光素酶片段可以融合在目标蛋白的N端或C端,选择原则是:①避免破坏目标蛋白的功能结构域和互作界面,如果蛋白A的互作界面在C端,则NLuc应融合在N端;②考虑蛋白的亚细胞定位信号(如信号肽通常在N端,不能被融合片段遮挡);③建议同时构建两种方向(NLuc-A和A-NLuc,CLuc-B和B-CLuc)进行测试,选择信号**强、背景**低的组合,通常一个蛋白的N端融合和另一个蛋白的C端融合组合效果较好;④对于膜蛋白(如GPCR),荧光素酶片段通常融合在胞内端(C端),以确保两个片段都在同一侧细胞空间内能够互补。 LCA实验对细胞转染和检测有什么要求?如何保证结果的可靠性? LCA实验的可靠性取决于细胞转染效率、融合蛋白表达水平和检测条件的优化:①细胞选择:优先选择转染效率高的细胞系(如HEK293T、Hela),如果必须使用原代细胞或难转染细胞,建议使用慢病毒感染建立稳定表达株;②转染条件优化:需优化两个融合质粒的转染比例(通常1:1,但可根据表达量调整为1:2或2:1),确保两个融合蛋白均有效表达且不过度表达(过表达会增加非特异性背景);③表达量验证:每次实验必须通过Western Blot或荧光标记验证两个融合蛋白的表达水平,排除表达量差异对结果的影响;④生物学重复:至少3组独立的生物学重复(不同批次细胞、不同时间转染),每组设3个技术重复孔,确保结果的可重复性;⑤检测条件优化:Fluc体系需优化底物D-Luciferin的终浓度(通常150μg/mL)和检测时间(加底物后5-15分钟内检测),NanoBiT体系使用Furimazine底物(通常按试剂盒说明),需在暗室或化学发光仪中检测避免光损失;⑥内参归一化:为消除转染效率和细胞数差异,可共转染海肾荧光素酶(Rluc)作为内参,以Fluc/Rluc比值进行归一化;或在检测发光后用CellTiter-Glo检测细胞活力进行归一化;⑦统计学分析:使用t检验(两组比较)或单因素方差分析(多组比较),p<0.05为显著差异,以相对发光倍数(实验组RLU/对照组RLU)表示互作强度。南京高斯生物在LCA实验中严格执行上述质量控制标准,确保实验结果可靠、可重复。 需要荧光素酶蛋白互补实验 LCA 技术服务?南京高斯生物为您提供从融合载体构建到发光检测分析的一站式专业服务 📞 全国统一服务热线:13675123245 📧 邮箱:1632273990@qq.com 📍 地址:南京市江宁区天元东路2289号5C栋405 上一篇RNA pulldown下一篇表面等离子共振(SPR) |